Wenn ich auf gute Blogposts verlinke, warum dann nicht auch auf gute Podcasts, die mir zwischen die Ohren kommen? Das dürfte sich also in so eine Art Serie entwickeln...
Diese Woche kann ich gleich mit drei Tipps loslegen:
Im immer sehr guten Futures in Biotech Podcast wird in der aktuellen Folge 37 [MP3-Link]Marty Chalfie interviewt, einer der drei diesjährigen Chemie-Nobelpreisträger. In dieser Folge geht es um seine Arbeit am Modellorganismus Caenorhabditis elegans und der Erforschung der molekularen Grundlagen des Tastsinnes. In der nächsten Folge soll dann die Entwicklung von GFP als Werkzeug angesprochen werden, für die er mit dem Nobelpreis ausgezeichnet wurde.
StarShipSofa ist die Audioversion von Science Fiction Magazinen wie Asimov's oder Astounding. Neben diversen Sektionen mit Fiktion, wie Gedichte und Short Stories, gibt es auch nicht-fiktionale Abschnitte. In der Folge Aural Delights 57 [MP3-Link] gibt JJ Campanella eine sehr gute Übersicht über grüne Gentechnik - informativ aber spannend, ohne Hype und Panik, dafür aber sehr ausgewogen. Ungefähr bei 55:30 fängt der Teil an.
BBC Radio 4 stellt mit In Our Time den meiner Meinung nach besten Geschichtspodcast ins Netz. Das liegt vielleicht daran, dass nicht wie im Geschichtsbuch ein Zeitpunkt oder ein Ereignis herausgepickt wird, und dann aufgezählt wird was da passiert ist. Vielmehr wird in jeder Folge ein Aspekt oder eine Idee aus Philosophie, Wissenschaft oder anderen Bereichen genommen und in der zeitlichen Entwicklung betrachtet. Aktuell gibt es anlässlich des Darwinjahres 2009 nur im Podcast Feed eine vierteilige Dokumentation über das Leben von Charles Darwin - klasse! Online sind bereits drei Teile [MP3-Links Teil 1, Teil 2, Teil 3].
Wenn ihr auch etwas Gutes gehört habt, immer her mit den Empfehlungen!
Posts mit dem Label Nobelpreis werden angezeigt. Alle Posts anzeigen
Posts mit dem Label Nobelpreis werden angezeigt. Alle Posts anzeigen
Mittwoch, Januar 07, 2009

Freitag, Januar 02, 2009
sinnfreie Kommentare von Nobelpreisträgern
Es ist ja mittlerweile fast schon ein Merkmal von Nobelpreisträgern, dass sie mit der Annahme des Preises ihr Hirn abgeben und danach nur noch mit unverständlichen Aussagen Schlagzeilen machen. Der bekannteste Vorfall dieser Art in letzter Zeit waren die rassistischen Äußerung von James Watson, die ihn letztlich auch seinen Posten als Direktor des Cold Spring Harbor Laboratory.
Jetzt hat die deutsche Nobelpreisträgerin Christiane Nüsslein-Volhard in einem ZEIT-Interview nachgezogen. Ich konnte davon nur eine kurze Pressemeldung finden, darin stehen aber schon ein paar knackige Sätze.
Kurz zusammengefasst hat Frau Nüsslein-Volhard etwas dagegen, dass so viel DNA sequenziert werde. Genauer gehe das Sequenzieren auf Kosten anderer biologischer Arbeiten, die sie für wichtiger hält. Ich verstehe ja, dass sie ihr Fachgebiet, die Entwicklungsbiologie, für total spannend hält, aber ich konnte nie nachvollziehen, wieso man anderen Gebieten ihre Relevanz absprechen will. DNA wird nicht sequenziert, dass man große Datenbanken mit vier Buchstaben füllen kann - Sequenzen sind die Grundlage für viele weitere Probleme. Unter anderem auch für die Entwicklungsbiologie.
Christiane Nüsslein-Volhard wurde 1995 zusammen mit Edward B. Lewis und Eric F. Wieschaus mit dem Nobelpreis geehrt. Das Thema war hier die Untersuchung der Genetik der Embryonalentwicklung. Die Gene, denen die von Wieschaus und Nüsslein-Volhard untersuchten Entwicklungsmutanten zugrundeliegen, sind heute Modelle für die entsprechenden Gene in anderen Organismen. Warum? Weil wir die Sequenzen dieser Gene kennen, und darüber verwandte Gene finden können!
Nebenbei geht Frau Nüsslein-Volhard in dem ZEIT-Interview auch noch gegen die synthetische Biologie im Allgemeinen, und Craig Venter im Besonderen, an. Jetzt mal ganz von Abneigungen gegen Venter und seinen Methoden abgesehen - ihre Aussage, dass Venter es nicht schaffen wird, einen künstlichen Organismus zu erzeugen, ist mittlerweile als sehr mutig zu bezeichnen. Er hat bereits veröffentlicht, dass er ein gesamtes Genom einer Bakterienart in die Zelle einer anderen Art überführen kann, und dass diese Zelle dann alle Eigenschaften der Spenderart annimmt. In einem zweiten Paper zeigte er, dass die chemische Synthese eines kompletten Genoms möglich ist. Kombiniert man beide Techniken, hat man einen künstlichen Organismus. Und das ist wohl nur noch eine Frage der Zeit.
Interessanterweise benutzt sich hier Frau Nüsslein-Volhard einer Argumentationstechnik, die auch gern von Kreationisten benutzt wird: dem argumentum ad ignorantiam.
"Die Natur ist wahnsinnig gut. So raffiniert, dass wir sie bis heute nicht vollständig verstanden haben."Ich bin mal gespannt, was da im vollständigen Interview noch zum Vorschein kommt.
Sonntag, Oktober 12, 2008
Die Nobelpreise 2008 für Life Sciences
Mit dem Preis für Physiologie oder Medizin am Montag und dem für Chemie am Mittwoch sind die möglichen Kategorien für Biologen in der diesjährigen Nobelpreisrunde durch. Die Preisträger für Medizin hatte dieses Jahr niemand auf seiner Liste möglicher Kandidaten. Ausgezeichnet für ihre Leistungen wurden die beiden Franzosen Françoise Barré-Sinoussi und Luc Montagnier für die Entdeckung des HI-Virus und der Deutsche Harald zur Hausen für die Verbindungen von Infektionen mit Papillomaviren und der Entstehung von Gebärmutterhalskrebs.
 Bakterien, die die aktuell vorhandenen Farbvarianten von fluoreszenten Proteinen exprimieren.
Am Mittwoch wurde dann die Entwicklung einer mittlerweile zentralen Methode der biologischen Grundlagenforschung mit dem Chemie-Nobelpreis belohnt: fluoreszente Proteine. Bereits in den 1960ern und 70ern isolierte Osamu Shimomura das grünfluoreszierende Protein GFP aus der Qualle Aequorea victoria. Dann geschah lange Zeit nichts, bis Douglas Prasher (der hier leer ausging) Anfang der 1990er mit der Klonierung des GFP-Gens begann, die Martin Chalfie schließlich beendete. Er konnte das Gen in das Bakterium Escherichia coli und den Fadenwurm Caenorhabditis elegans einbringen und zeigte, dass die Zellen dieser Organismen, die GFP produzierten, grün fluoreszierten. Damit war der Grundstein gelegt für einen Siegeszug von GFP in fast jedem Gebiet der Life Sciences. Roger Y. Tsien vergrößerte das Potential um ein Vielfaches - ausgehend vom herkömmlichen GFP erzeugte er eine ganze Reihe von Farbvarianten durch künstliche Evolution im Labor. Die Anwendungsmöglichkeiten für fluoreszente Proteine sind fast unendlich, eine Auswahl der grundlegenden findet sich bei WeiterGen [1], dem Fischblog und Pharyngula und zahlreichen weiteren Blogs.
Ich möchte deshalb hier einige der abgeleiteten Methoden vorstellen, die aber alle auf den Grundeigenschaften von fluoreszenten Proteinen basieren.
FRET (Fluorescence Resonance Energy Transfer)
 Um ein fluoreszentes Protein (FP) sichtbar zu machen, muss man es mit Licht einer bestimmten Wellenlänge bestrahlen (das Anregungslicht). Das FP emittiert darauf ein Licht einer größeren (energieärmeren) Wellenlänge. Im Beispiel von GFP sind das 488 bzw. 509 nm. Bei FRET nutzt man nun das Wissen um Anregungs- und Emissionwellenlängen, um die Interaktion von Proteinen zu untersuchen. Will ich wissen, ob Protein A und Protein B miteinander interagieren, dann kann ich je ein FP mit einem der Zielproteine verknüpfen. Nur bei der Interaktion beider Proteine kommen die beiden FPs in eine räumliche Nähe zueinander. Das hat aber auf die Fluoreszenz einen nützlichen Effekt: Rege ich das erste FP mit seinem eigenen Anregungslicht an, dann erhalte ich nicht wie übliche dessen Emissionslicht zurück, sondern das des zweiten FPs, das ich überhaupt nicht angeregt habe! Wie geht das? Aufgrund der großen räumlichen Nähe der beiden FPs kann das erste FP seine Energie nach der Anregung auf das zweite FP übertragen, anstatt selbst Licht zu emittieren. Das heißt also: nur wenn die beiden Proteine A und B miteinander interagieren, kommt es zu FRET zwischen den beiden damit verknüpften FPs. Durch FRET kann man untersuchen, ob, wo und wann Proteine in der lebenden Zelle interagieren. Clever!
BiFC (Bimolecular Fluorescence Complementation)
FRET ist eine tolle Methode, um Proteininteraktionen zu untersuchen. Leider benötigt man dafür spezielle Geräte (Mikroskop, Laser, Detektion), man kann ein FRET-Experiment nicht mit einem normalen Fluoreszenzmikroskop durchführen. Das ist mit der etwas neueren Methode BiFC (oft auch split-YFP genannt, weil der Versuch klassischerweise mit dem Yellow Fluorescenz Protein YFP durchgeführt wird) aber gut möglich. Grundlage dieser Methode ist eine tolle Eigenschaft der fluoreszenten Proteine: man kann das Gen für ein FP in zwei Hälften teilen, die beiden Proteinhälften bilden in der Zelle dann ein funktionsfähiges, fluoreszierendes Protein! Praktisch an der Sache ist aber, dass sie das für sich alleine nicht machen, sondern nur wenn die FP-Hälften künstlich in enge räumliche Nähe in der Zelle gebracht werden. Zum Beispiel, indem man je eine Hälfte an eins von zwei Zielproteinen hängt, deren Interaktion man untersuchen möchte. So kommen die FP-Hälften nur zusammen, wenn die Zielproteine interagieren - man sieht die Fluoreszenz also nur dann und dort in der Zelle, wann und wo die Interaktion stattfindet. [2]
FRAP (Fluorescence Recovery After Photobleaching)
In der Zelle herrscht jede Menge Dynamik. Proteine werden in bestimmte Organelle transportiert, werden zu bestimmten Zeitpunkten oder äußeren Zuständen aktiv oder inaktiv, etc. Mit Hilfe von FPs hat man die Möglichkeit, die Wanderung von Proteinen in der Zelle zu beobachten. Ursprünglich fluoresziert jeder Bereich in der Zelle, in dem sich das mit dem FP verknüpfte Zielprotein befindet. Wenn ich nun wissen möchte, ob das Zielprotein in einen kleinen Bereich in der Zelle transportiert wird (und wie schnell das geht, wie es reguliert wird, wann es geschieht), kann ich eine normalerweise problematische Eigenschaft von FPs für meinen Vorteil nutzen. Die große Energiemenge, mit der FPs bombardiert werden, führt irgendwann zu ihrem Ausbleichen. Das heißt, dass sie letztlich zerstört werden. In normalen Experimenten stört dies natürlich ungemein, weil man nicht unbegrenzt Beobachtungen machen kann. Für diese eine Anwendung hilft das Ausbleichen aber: Mit sehr starkem Anregungslicht kann der Zielbereich in der Zelle künstlich ausgebleicht werden. Wird das Zielprotein in der Zelle dorthin transportiert, dann sollte die Fluoreszenz aber mit der Zeit wieder zunehmen. Jetzt kann man die Zeit bestimmen, bis die Fluoreszenz wieder den Ausgangswert erreicht hat, und dadurch auf die Transportrate schließen. Viele Proteine werden durch spezielle Transportproteine durch die Zelle befördert. Dies kann man testen, indem man ein FRAP-Experiment durchführt und dabei einzelne Transportproteine ausschaltet. Ist ein solches am Transport des Zielproteins beteiligt, dann sollte die Fluoreszenz nach dem Ausbleichen nicht mehr zurückkehren.
Brainbow
 Diese Methode wurde von Jeff W. Lichtman und Joshua R. Sanes von Harvard entwickelt, um einzelne Nervenzellen individuell anzufärben. Im Grunde kombinierten sie die vorhandenen Farben der fluoreszenten Proteine miteinander, um so über 100 verschiedene Farben erzeugen. Dies ist möglich über ein spezielles genetisches System, das zufällig nur wenige FP-Gene in einer Zelle aktiviert. So sollten, bei einer so großen Bandbreite von möglichen Farben, benachbarte Zellen unterschiedlich gefärbt sein. Und genauso ist es auch, wie Bilder wie dieses hier zeigen.
Das ist nur eine kleine Auswahl von Methoden, die alle darauf beruhen, dass die Preisträger des dieshährigen Nobelpreises für Chemie das Potential von fluoreszenten Proteinen für die wissenschaftliche Gemeinschaft entwickelten. Weitere abgeleitete Methoden findet man in dieser Liste auf der Wikipedia.
Eine kurze Geschichte möchte ich noch erwähnen, die nach der Verkündung der Nobelpreisträger für Chemie am Mittwoch zutage kam. Douglas Prasher, der den Preis nicht erhielt, begann wie ich oben geschrieben habe mit der Klonierung von GFP. Nach ersten Erfolgen musste er aber das Projekt einstellen, weil seine Fördermittel eingestellt wurden [3]. Wie ich auf The Daily Transcript erfahren habe, führte NPR (das National Public Radio der USA) ein Interview mit Prasher über seinen Teil an der GFP-Forschung durch. Er versteht, warum er den Preis nicht erhalten hat, und gönnt ihn den Preisträgern, die durch Prashers Vorarbeit erst zu ihren Ergebnissen kamen.
Sehr traurig ist aber, dass Prasher nun überhaupt nicht mehr forscht, sondern Busfahrer ist, um seine Familie zu ernähren.
[1] Tobias von WeiterGen hatte übrigens vor der Vergabe der Nobelpreise einen kleinen Wettbewerb gestartet, in dem man die Gewinner für Medizin und Chemie tippen konnte. Ich lag zwar bei Medizin total daneben, aber den Chemie-Nobelpreis für GFP habe ich richtig getippt und habe dafür ein WeiterGen-Shirt gewonnen! Dass ich ein Bild von dem Tshirt poste, sobald es bei mir ankommt ist ja klar!
[2] Vor kurzem wurde eine Verbindung von FRET und BiFC beschrieben, um Interaktionen von trimeren Proteinkomplexen zu untersuchen. Durch splitten des Akzeptor-FPs eines klassischen FRET-Experiments in zwei BiFC-Hälften klappt der Resonanzenergietransfer nur, wenn zuerst die beiden FP-Hälften zu einem funktionellen FP zusammengebaut werden, und anschließend das Donor-FP in räumliche Nähe kommt.
[3] Was mal wieder zeigt, wie kurzsichtig die finanziellen Trägereinrichtungen sein können.
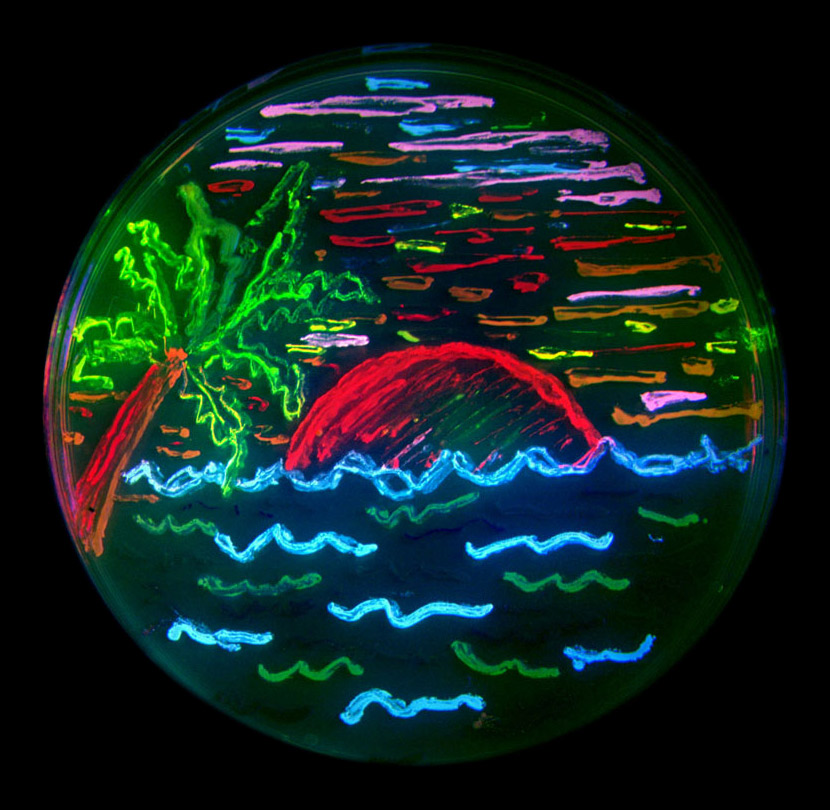 Bakterien, die die aktuell vorhandenen Farbvarianten von fluoreszenten Proteinen exprimieren.
Am Mittwoch wurde dann die Entwicklung einer mittlerweile zentralen Methode der biologischen Grundlagenforschung mit dem Chemie-Nobelpreis belohnt: fluoreszente Proteine. Bereits in den 1960ern und 70ern isolierte Osamu Shimomura das grünfluoreszierende Protein GFP aus der Qualle Aequorea victoria. Dann geschah lange Zeit nichts, bis Douglas Prasher (der hier leer ausging) Anfang der 1990er mit der Klonierung des GFP-Gens begann, die Martin Chalfie schließlich beendete. Er konnte das Gen in das Bakterium Escherichia coli und den Fadenwurm Caenorhabditis elegans einbringen und zeigte, dass die Zellen dieser Organismen, die GFP produzierten, grün fluoreszierten. Damit war der Grundstein gelegt für einen Siegeszug von GFP in fast jedem Gebiet der Life Sciences. Roger Y. Tsien vergrößerte das Potential um ein Vielfaches - ausgehend vom herkömmlichen GFP erzeugte er eine ganze Reihe von Farbvarianten durch künstliche Evolution im Labor. Die Anwendungsmöglichkeiten für fluoreszente Proteine sind fast unendlich, eine Auswahl der grundlegenden findet sich bei WeiterGen [1], dem Fischblog und Pharyngula und zahlreichen weiteren Blogs.
Ich möchte deshalb hier einige der abgeleiteten Methoden vorstellen, die aber alle auf den Grundeigenschaften von fluoreszenten Proteinen basieren.
FRET (Fluorescence Resonance Energy Transfer)
 Um ein fluoreszentes Protein (FP) sichtbar zu machen, muss man es mit Licht einer bestimmten Wellenlänge bestrahlen (das Anregungslicht). Das FP emittiert darauf ein Licht einer größeren (energieärmeren) Wellenlänge. Im Beispiel von GFP sind das 488 bzw. 509 nm. Bei FRET nutzt man nun das Wissen um Anregungs- und Emissionwellenlängen, um die Interaktion von Proteinen zu untersuchen. Will ich wissen, ob Protein A und Protein B miteinander interagieren, dann kann ich je ein FP mit einem der Zielproteine verknüpfen. Nur bei der Interaktion beider Proteine kommen die beiden FPs in eine räumliche Nähe zueinander. Das hat aber auf die Fluoreszenz einen nützlichen Effekt: Rege ich das erste FP mit seinem eigenen Anregungslicht an, dann erhalte ich nicht wie übliche dessen Emissionslicht zurück, sondern das des zweiten FPs, das ich überhaupt nicht angeregt habe! Wie geht das? Aufgrund der großen räumlichen Nähe der beiden FPs kann das erste FP seine Energie nach der Anregung auf das zweite FP übertragen, anstatt selbst Licht zu emittieren. Das heißt also: nur wenn die beiden Proteine A und B miteinander interagieren, kommt es zu FRET zwischen den beiden damit verknüpften FPs. Durch FRET kann man untersuchen, ob, wo und wann Proteine in der lebenden Zelle interagieren. Clever!
BiFC (Bimolecular Fluorescence Complementation)
FRET ist eine tolle Methode, um Proteininteraktionen zu untersuchen. Leider benötigt man dafür spezielle Geräte (Mikroskop, Laser, Detektion), man kann ein FRET-Experiment nicht mit einem normalen Fluoreszenzmikroskop durchführen. Das ist mit der etwas neueren Methode BiFC (oft auch split-YFP genannt, weil der Versuch klassischerweise mit dem Yellow Fluorescenz Protein YFP durchgeführt wird) aber gut möglich. Grundlage dieser Methode ist eine tolle Eigenschaft der fluoreszenten Proteine: man kann das Gen für ein FP in zwei Hälften teilen, die beiden Proteinhälften bilden in der Zelle dann ein funktionsfähiges, fluoreszierendes Protein! Praktisch an der Sache ist aber, dass sie das für sich alleine nicht machen, sondern nur wenn die FP-Hälften künstlich in enge räumliche Nähe in der Zelle gebracht werden. Zum Beispiel, indem man je eine Hälfte an eins von zwei Zielproteinen hängt, deren Interaktion man untersuchen möchte. So kommen die FP-Hälften nur zusammen, wenn die Zielproteine interagieren - man sieht die Fluoreszenz also nur dann und dort in der Zelle, wann und wo die Interaktion stattfindet. [2]

FRAP (Fluorescence Recovery After Photobleaching)

In der Zelle herrscht jede Menge Dynamik. Proteine werden in bestimmte Organelle transportiert, werden zu bestimmten Zeitpunkten oder äußeren Zuständen aktiv oder inaktiv, etc. Mit Hilfe von FPs hat man die Möglichkeit, die Wanderung von Proteinen in der Zelle zu beobachten. Ursprünglich fluoresziert jeder Bereich in der Zelle, in dem sich das mit dem FP verknüpfte Zielprotein befindet. Wenn ich nun wissen möchte, ob das Zielprotein in einen kleinen Bereich in der Zelle transportiert wird (und wie schnell das geht, wie es reguliert wird, wann es geschieht), kann ich eine normalerweise problematische Eigenschaft von FPs für meinen Vorteil nutzen. Die große Energiemenge, mit der FPs bombardiert werden, führt irgendwann zu ihrem Ausbleichen. Das heißt, dass sie letztlich zerstört werden. In normalen Experimenten stört dies natürlich ungemein, weil man nicht unbegrenzt Beobachtungen machen kann. Für diese eine Anwendung hilft das Ausbleichen aber: Mit sehr starkem Anregungslicht kann der Zielbereich in der Zelle künstlich ausgebleicht werden. Wird das Zielprotein in der Zelle dorthin transportiert, dann sollte die Fluoreszenz aber mit der Zeit wieder zunehmen. Jetzt kann man die Zeit bestimmen, bis die Fluoreszenz wieder den Ausgangswert erreicht hat, und dadurch auf die Transportrate schließen. Viele Proteine werden durch spezielle Transportproteine durch die Zelle befördert. Dies kann man testen, indem man ein FRAP-Experiment durchführt und dabei einzelne Transportproteine ausschaltet. Ist ein solches am Transport des Zielproteins beteiligt, dann sollte die Fluoreszenz nach dem Ausbleichen nicht mehr zurückkehren.
Brainbow
 Diese Methode wurde von Jeff W. Lichtman und Joshua R. Sanes von Harvard entwickelt, um einzelne Nervenzellen individuell anzufärben. Im Grunde kombinierten sie die vorhandenen Farben der fluoreszenten Proteine miteinander, um so über 100 verschiedene Farben erzeugen. Dies ist möglich über ein spezielles genetisches System, das zufällig nur wenige FP-Gene in einer Zelle aktiviert. So sollten, bei einer so großen Bandbreite von möglichen Farben, benachbarte Zellen unterschiedlich gefärbt sein. Und genauso ist es auch, wie Bilder wie dieses hier zeigen.
Das ist nur eine kleine Auswahl von Methoden, die alle darauf beruhen, dass die Preisträger des dieshährigen Nobelpreises für Chemie das Potential von fluoreszenten Proteinen für die wissenschaftliche Gemeinschaft entwickelten. Weitere abgeleitete Methoden findet man in dieser Liste auf der Wikipedia.
Eine kurze Geschichte möchte ich noch erwähnen, die nach der Verkündung der Nobelpreisträger für Chemie am Mittwoch zutage kam. Douglas Prasher, der den Preis nicht erhielt, begann wie ich oben geschrieben habe mit der Klonierung von GFP. Nach ersten Erfolgen musste er aber das Projekt einstellen, weil seine Fördermittel eingestellt wurden [3]. Wie ich auf The Daily Transcript erfahren habe, führte NPR (das National Public Radio der USA) ein Interview mit Prasher über seinen Teil an der GFP-Forschung durch. Er versteht, warum er den Preis nicht erhalten hat, und gönnt ihn den Preisträgern, die durch Prashers Vorarbeit erst zu ihren Ergebnissen kamen.
One of the winners, Roger Tsien of the University of California, San Diego, says he was lucky. At just the right time, a researcher named Douglas Prasher at the Woods Hole Oceanographic Institution in Massachusetts isolated the gene that Tsien wanted.
"So I found his phone number, called him up, and to my amazement he was willing to give out the gene," Tsien says.
Another of the Nobel laureates, Martin Chalfie of New York's Columbia University, also got the gene from Prasher.
Sehr traurig ist aber, dass Prasher nun überhaupt nicht mehr forscht, sondern Busfahrer ist, um seine Familie zu ernähren.
"I got a hard luck story," he says.
[...]
"At that time, I knew I was going to get out of it; my funding had already run out," Prasher says.
He went to work for a laboratory run by the U.S. Department of Agriculture, then took a job with a NASA contractor in Huntsville. But two-and-a-half years ago, NASA cut his project and Prasher lost his job.
He tried to find a job in science but failed. So he went to work at the car dealership.
[...]
But the job does not pay enough to support his family.
"Our savings is gone; just totally gone," he says.
Prasher is still looking for a research job, but he worries that after two-and-a-half years, his knowledge and skills may be out of date.
That's not what some of his former colleagues say. One called Prasher's current situation a "staggering waste of talent."
[1] Tobias von WeiterGen hatte übrigens vor der Vergabe der Nobelpreise einen kleinen Wettbewerb gestartet, in dem man die Gewinner für Medizin und Chemie tippen konnte. Ich lag zwar bei Medizin total daneben, aber den Chemie-Nobelpreis für GFP habe ich richtig getippt und habe dafür ein WeiterGen-Shirt gewonnen! Dass ich ein Bild von dem Tshirt poste, sobald es bei mir ankommt ist ja klar!
[2] Vor kurzem wurde eine Verbindung von FRET und BiFC beschrieben, um Interaktionen von trimeren Proteinkomplexen zu untersuchen. Durch splitten des Akzeptor-FPs eines klassischen FRET-Experiments in zwei BiFC-Hälften klappt der Resonanzenergietransfer nur, wenn zuerst die beiden FP-Hälften zu einem funktionellen FP zusammengebaut werden, und anschließend das Donor-FP in räumliche Nähe kommt.
[3] Was mal wieder zeigt, wie kurzsichtig die finanziellen Trägereinrichtungen sein können.
Abonnieren
Posts (Atom)

 Posts